La fiche de cours
Résumé en cinq points
- Les échanges de gaz respiratoires se font par diffusion simple et obéissent à la loi de Fick, d'où trois leviers : surface étendue, barrière fine, gradient maintenu.
- Les propriétés physico-chimiques du milieu, teneur en dioxygène, densité, viscosité, diffusion, expliquent l'organisation différente des surfaces aquatiques et aériennes.
- Convection externe et convection interne maintiennent les différences de pression partielle, et leur agencement, notamment à contre-courant, fixe l'efficacité de l'extraction.
- Des organisations non homologues convergent fonctionnellement dans un même milieu, ce qui est un argument central des comparaisons de travaux pratiques.
- L'hémoglobine, transporteur coopératif à courbe sigmoïde, charge le dioxygène au poumon et le libère dans les tissus, d'autant plus que le dioxyde de carbone, l'acidité, le 2,3-bisphosphoglycérate et la température augmentent.
Pourquoi ce chapitre
La respiration est la fonction où la contrainte physique est la plus visible. Un organisme aérobie consomme du dioxygène et rejette du dioxyde de carbone, et ces deux gaz ne franchissent une membrane que par diffusion. La diffusion est un processus lent dès que la distance dépasse quelques dizaines de micromètres. Tout Métazoaire de taille supérieure à quelques millimètres est donc contraint par la physique, et l'évolution a produit un petit nombre de solutions qui se ressemblent beaucoup.
Le chapitre est donc un exercice de raisonnement autant qu'un chapitre d'anatomie. On part d'une loi physique, la loi de Fick, on en déduit les propriétés qu'une surface d'échange efficace doit posséder, puis on vérifie que les organismes disséqués en travaux pratiques les possèdent effectivement. C'est un modèle de démarche que les concours apprécient, car elle permet de traiter un organisme que l'on n'a jamais étudié.
Le chapitre prolonge l'étude des appareils du Bovidé (SV-A-1), s'appuie sur les échanges membranaires (SV-C-3) et sur l'interaction entre une protéine et son ligand (SV-D-2-4). Les mécanismes de contrôle de la ventilation ne sont pas au programme.
Notions et mécanismes
Le problème posé et la loi de Fick
Les échanges de gaz respiratoires se font par diffusion simple, sans transporteur et sans dépense d'énergie. Le moteur est la différence de pression partielle du gaz de part et d'autre de la surface.
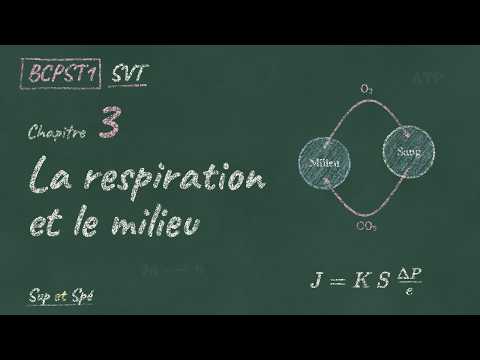
La loi de Fick, appliquée à un échangeur, s'écrit de la manière suivante. Le flux de gaz qui traverse la surface est proportionnel à la surface d'échange S, proportionnel à la différence de pression partielle ΔP entre les deux milieux, et inversement proportionnel à l'épaisseur e de la barrière à franchir. Un coefficient, qui dépend du gaz et du matériau traversé, complète l'expression. On l'écrira J = K × S × ΔP / e.
Trois leviers apparaissent donc, et trois seulement. Augmenter S. Diminuer e. Maintenir ΔP élevé. Toute l'organisation des appareils respiratoires découle de ces trois leviers, et une copie qui les cite explicitement avant de décrire une structure part avec un avantage net.
Ce que valent les deux milieux
Le milieu aquatique et le milieu aérien n'imposent pas les mêmes contraintes, et c'est cette différence qui explique la diversité des solutions.
L'air contient environ 21 pour cent de dioxygène en volume, soit de l'ordre de 210 millilitres de dioxygène par litre d'air. L'eau, à l'équilibre avec l'atmosphère, en contient de l'ordre de 7 millilitres par litre à 20 °C, soit environ trente fois moins. Cette teneur diminue encore quand la température augmente et quand la salinité augmente.
L'eau est aussi environ mille fois plus dense que l'air et environ cinquante fois plus visqueuse. La déplacer coûte donc beaucoup plus cher. Enfin, le coefficient de diffusion du dioxygène est de l'ordre de dix mille fois plus faible dans l'eau que dans l'air.
Conclusion à retenir. En milieu aquatique, le dioxygène est rare, coûteux à renouveler et lent à diffuser : les surfaces d'échange doivent être très étendues et le renouvellement du fluide doit être très efficace. En milieu aérien, le dioxygène est abondant et bon marché à renouveler, mais la surface d'échange, nécessairement humide, s'assèche : la contrainte principale devient la déshydratation, d'où des surfaces internalisées.
Les caractéristiques communes des surfaces respiratoires
Une surface respiratoire spécialisée est étendue, et cette extension est obtenue par une subdivision répétée qui multiplie la surface sans multiplier l'encombrement. Elle est fine, souvent réduite à un épithélium simple, parfois pavimenteux, accolé à un endothélium capillaire. Elle est humide, car un gaz ne franchit une membrane biologique qu'après passage en solution. Elle est très vascularisée, ou directement au contact des cellules dans le cas des trachées. Elle est enfin associée à un dispositif de renouvellement des fluides de part et d'autre.
Certains Métazoaires n'ont pas de surface spécialisée et échangent par l'ensemble du tégument. C'est possible seulement si le rapport surface sur volume reste élevé, donc pour des organismes petits, aplatis ou peu actifs.
Convection externe et convection interne
La diffusion consomme le gradient. Si rien ne renouvelle les fluides, les pressions partielles s'égalisent de part et d'autre de la surface et le flux s'annule. Le maintien de ΔP est donc un problème permanent, résolu par deux convections.
La convection externe est le renouvellement du fluide du côté du milieu. C'est la ventilation. Chez le Mammifère, les mouvements du diaphragme et de la cage thoracique font entrer et sortir l'air, de manière alternante. Chez le Téléostéen, un jeu coordonné de la bouche et des opercules fait circuler l'eau en un courant continu et unidirectionnel sur les branchies. Chez la moule, les cils des branchies créent un courant d'eau qui sert à la fois à la respiration et à la nutrition par filtration. Chez le criquet, des mouvements de l'abdomen ventilent le système trachéen.
La convection interne est le renouvellement du fluide du côté de l'organisme. C'est la circulation du sang ou de l'hémolymphe. Elle emporte le dioxygène dès qu'il a franchi la surface, ce qui maintient basse la pression partielle du côté interne. Le système trachéen des Hexapodes fait exception : les trachées conduisent l'air directement jusqu'aux cellules et il n'y a pas de transport du dioxygène par un liquide circulant.
L'agencement relatif des deux courants détermine l'efficacité. Dans une branchie de Téléostéen, l'eau et le sang circulent en sens opposés au niveau des lamelles branchiales. Ce dispositif à contre-courant maintient une différence de pression partielle favorable sur toute la longueur de l'échangeur, et permet une extraction du dioxygène de l'eau de l'ordre de 70 à 80 pour cent. Dans un poumon de Mammifère, l'air alvéolaire est renouvelé partiellement et de façon alternante, et l'extraction du dioxygène de l'air ventilé est de l'ordre de 20 à 25 pour cent. Le résultat n'est pas paradoxal : l'air étant trente fois plus riche, une extraction modeste suffit largement.
Homologies et convergences
Deux structures sont homologues si elles dérivent d'une structure présente chez l'ancêtre commun, quelle que soit leur fonction actuelle. Elles sont convergentes, ou analogues, si elles assurent la même fonction sans partager cette origine.
Les branchies d'un Téléostéen et celles d'un Mollusque Bivalve assurent la même fonction dans le même milieu et présentent des traits communs frappants, subdivision en filaments, cils ou courant d'eau, forte vascularisation. Elles ne dérivent pourtant pas d'une structure branchiale de l'ancêtre commun des deux taxons. Ce sont des convergences, liées aux mêmes contraintes physico-chimiques du milieu aquatique. En revanche, les poumons des différents Tétrapodes sont homologues entre eux.
La formule à retenir : dans un même milieu, des organisations différentes convergent fonctionnellement parce que la physique du milieu est la même pour tous.
Le transport du dioxygène par l'hémoglobine
Le dioxygène est peu soluble dans le plasma. Une solution aqueuse au contact de l'air alvéolaire ne dissout que quelques millilitres de dioxygène par litre, ce qui est très insuffisant pour un Mammifère actif. Un transporteur est donc indispensable.
L'hémoglobine de Mammifère est une protéine tétramérique, faite de quatre chaînes polypeptidiques portant chacune un groupement hème, dont l'atome de fer au degré d'oxydation deux fixe une molécule de dioxygène. Une hémoglobine fixe donc au maximum quatre dioxygènes. Elle est contenue dans les hématies, à forte concentration.
La courbe de saturation de l'hémoglobine en fonction de la pression partielle de dioxygène est sigmoïde. Cette forme traduit la coopérativité : la fixation d'une première molécule de dioxygène provoque un changement de conformation du tétramère qui augmente l'affinité des sites encore libres, et réciproquement la libération d'une molécule diminue l'affinité des autres sites. Une protéine michaelienne à un seul site, comme la myoglobine, donne au contraire une hyperbole.
L'intérêt fonctionnel est direct. Dans les poumons, la pression partielle de dioxygène est élevée et l'hémoglobine se sature presque complètement. Dans les tissus, la pression partielle est basse et l'on se situe dans la partie raide de la sigmoïde : une faible baisse de pression partielle provoque une forte libération de dioxygène. La coopérativité transforme l'hémoglobine en transporteur qui charge complètement et décharge massivement, ce qu'une hyperbole ne permettrait pas.
Quatre paramètres modulent l'affinité, et tous vont dans le même sens physiologique. Une augmentation de la teneur en dioxyde de carbone, une diminution du pH, une augmentation de la teneur des hématies en 2,3-bisphosphoglycérate et une augmentation de la température déplacent la courbe vers la droite, c'est-à-dire diminuent l'affinité de l'hémoglobine pour le dioxygène et favorisent le relargage.
Le raisonnement à tenir est toujours le même. Un tissu très actif produit davantage de dioxyde de carbone, donc acidifie localement le sang, et dégage de la chaleur. Ces conditions locales diminuent l'affinité de l'hémoglobine, donc augmentent la quantité de dioxygène libérée là où le besoin est le plus grand. Dans le poumon, les conditions inverses rétablissent une affinité élevée et permettent la charge. L'effet du 2,3-bisphosphoglycérate, produit par les hématies, ajuste l'affinité sur des durées plus longues, par exemple en altitude.
Enfin, la quantité de transporteurs limite la quantité de dioxygène transportée, donc l'activité aérobie possible de l'organisme. À l'échelle de courtes durées, la modulation des quantités de gaz échangés passe surtout par des variations contrôlées de la convection, ventilation et débit circulatoire.
Exemples et ordres de grandeur
Chez un Mammifère, la surface alvéolaire totale se compte en dizaines de mètres carrés, obtenue par plusieurs centaines de millions d'alvéoles de l'ordre de 200 à 300 micromètres de diamètre. L'épaisseur de la barrière séparant l'air alvéolaire du sang capillaire est de l'ordre de quelques dixièmes de micromètre. Ce sont exactement les deux leviers de la loi de Fick, portés à leur maximum.
Le schéma d'une branchie de Téléostéen à décrire en mots. Un arc branchial osseux porte deux rangées de filaments branchiaux. Chaque filament porte, perpendiculairement, des lamelles très fines empilées. L'eau circule entre les lamelles dans un sens, le sang circule dans les lamelles dans le sens opposé. On dessine deux flèches antiparallèles et l'on annote le gradient qui reste favorable d'un bout à l'autre.
Le schéma d'un système trachéen d'Hexapode. Des orifices latéraux, les stigmates, s'ouvrent sur des troncs trachéens qui se ramifient en trachées puis en trachéoles de diamètre micrométrique, lesquelles atteignent directement les cellules. On annote l'absence de transport sanguin du dioxygène et le fait que l'air, et non l'eau, circule jusqu'au tissu.
Pour l'hémoglobine, la pression partielle de dioxygène dans l'air alvéolaire est de l'ordre de 13 kilopascals et la saturation y est proche de 97 pour cent. Dans un tissu au repos, la pression partielle est de l'ordre de 5 kilopascals et la saturation tombe vers 70 à 75 pour cent. La pression partielle qui donne une saturation de 50 pour cent, appelée P50, sert de repère pour comparer deux courbes.
Méthodes et savoir-faire
À partir des dissections au programme, souris, Téléostéen, criquet et moule, il faut savoir dégager les grands traits de l'organisation des surfaces d'échange, relier les structures observées aux modalités de renouvellement des fluides, mettre en relation cette organisation avec les paramètres du milieu, et repérer homologies et convergences.
Sur préparations microscopiques et clichés d'histologie, il faut savoir identifier les caractéristiques structurales qui optimisent les échanges à toutes les échelles : subdivision de l'organe, finesse de l'épithélium, proximité des capillaires, humidité de la surface.
Il faut savoir exploiter quantitativement la loi de Fick, au moins pour comparer deux situations. Le raisonnement type consiste à dire quelle variable change, dans quel sens, et donc comment varie le flux, sans nécessairement calculer.
Il faut savoir lire une courbe de saturation de l'hémoglobine : repérer la P50, comparer deux courbes déplacées, et traduire un déplacement vers la droite en termes d'affinité et de relargage. Il faut aussi savoir justifier la forme sigmoïde par la coopérativité, et non l'inverse.
Ce qu'il faut savoir mobiliser en colle et à l'écrit
- Énoncer la loi de Fick appliquée à un échangeur et en déduire les trois propriétés attendues d'une surface respiratoire efficace.
- Comparer chiffres à l'appui le milieu aquatique et le milieu aérien sur la teneur en dioxygène, la densité, la viscosité et la vitesse de diffusion.
- Dessiner et annoter le dispositif à contre-courant d'une branchie de Téléostéen, et expliquer pourquoi il permet une extraction élevée.
- Expliquer pourquoi un poumon est interne alors qu'une branchie est externe, en partant de la contrainte de déshydratation.
- Distinguer convection externe et convection interne sur chacun des quatre organismes disséqués, et signaler le cas particulier des trachées.
- Argumenter qu'une ressemblance entre branchies de Téléostéen et de Bivalve est une convergence, avec la définition rigoureuse d'homologie.
- Exploiter une courbe de saturation, y compris avec deux courbes correspondant à deux pH ou deux températures, et conclure sur le relargage tissulaire.
- Piège fréquent : confondre respiration au sens des échanges gazeux et respiration cellulaire au sens du catabolisme aérobie. Préciser l'échelle dès la première phrase.
Méthodes et exercices
Notions et mécanismes clés
- Respiration au sens de ce chapitre : échanges de dioxygène et de dioxyde de carbone entre l'organisme et son milieu, à distinguer de la respiration cellulaire.
- Pression partielle : fraction de la pression totale due à un gaz. C'est elle, et non la concentration, qui commande la diffusion à travers une membrane.
- Loi de Fick pour un échangeur : le flux J est proportionnel à la surface S et à la différence de pression partielle ΔP, et inversement proportionnel à l'épaisseur e, soit J = K × S × ΔP / e, K dépendant du gaz et du matériau.
- Trois leviers et trois seulement : augmenter S, diminuer e, maintenir ΔP.
- Surface respiratoire spécialisée : étendue par subdivision, fine, humide, vascularisée ou au contact direct des cellules, associée à un renouvellement des fluides.
- Surface non spécialisée : tégument entier, possible seulement si le rapport surface sur volume reste élevé.
- Convection externe : renouvellement du fluide côté milieu, c'est la ventilation. Convection interne : renouvellement côté organisme, c'est la circulation.
- Échangeur à contre-courant : eau et sang circulent en sens opposés dans la branchie, le gradient reste favorable sur toute la longueur.
- Efficacité d'extraction : fraction du dioxygène du fluide ventilé qui passe dans l'organisme, de l'ordre de 70 à 80 % pour une branchie de Téléostéen, 20 à 25 % pour un poumon de Mammifère.
- Système trachéen : air conduit jusqu'aux cellules par des tubes, sans transport sanguin du dioxygène.
- Homologie : même origine chez l'ancêtre commun. Convergence : même fonction sous la même contrainte sans origine commune.
- Hémoglobine : tétramère à quatre hèmes, quatre dioxygènes au maximum, concentrée dans les hématies.
- Coopérativité : la fixation d'un dioxygène augmente l'affinité des sites restants, d'où une courbe de saturation sigmoïde. Une protéine à un seul site donne une hyperbole.
- P50 : pression partielle de dioxygène pour laquelle la saturation vaut 50 %. Plus la P50 est élevée, plus l'affinité est faible.
- Facteurs qui abaissent l'affinité et déplacent la courbe vers la droite : dioxyde de carbone, acidité, 2,3-bisphosphoglycérate, température.
- La quantité de transporteurs limite le transport, la modulation à court terme passe par la convection.
Chaînes de raisonnement
De la loi de Fick à l'anatomie. La diffusion est le seul mécanisme de franchissement d'une surface respiratoire. Le flux dépend de trois grandeurs. Toute structure respiratoire efficace doit donc être étendue, fine et soumise à un gradient entretenu. On peut ainsi prédire les propriétés d'un organe respiratoire avant de l'observer, et les vérifier ensuite sur la dissection.
Pourquoi la taille impose une surface spécialisée. Quand la longueur d'un organisme double, sa surface est multipliée par quatre et son volume par huit. Les besoins suivent le volume, les échanges suivent la surface. Au-delà de quelques millimètres, ou d'une forme non aplatie, le tégument ne suffit plus et il faut une surface dédiée, obtenue par subdivision.
Respirer dans l'eau. L'eau contient trente fois moins de dioxygène que l'air, elle est mille fois plus dense, cinquante fois plus visqueuse, et le dioxygène y diffuse dix mille fois plus lentement. Il faut donc une surface très étendue, un courant continu et unidirectionnel qui coûte le moins possible, et un agencement à contre-courant pour extraire le maximum d'un fluide pauvre. Les branchies sont externes parce que le milieu ne les dessèche pas.
Respirer dans l'air. L'air est riche et facile à déplacer, mais il assèche toute surface humide. La contrainte principale devient la déshydratation. La surface est donc internalisée, dans un poumon ou des trachées, et ventilée de façon alternante. Une extraction de 20 à 25 % suffit parce que le fluide est riche.
Pourquoi la convection est indispensable. La diffusion consomme le gradient qui la fait exister. Sans renouvellement, les pressions partielles s'égalisent et le flux s'annule. La ventilation maintient une pression partielle élevée côté milieu, la circulation maintient une pression partielle basse côté organisme. Augmenter l'une ou l'autre est le moyen le plus rapide d'augmenter les échanges lors d'un effort.
De la coopérativité à la fonction. Une courbe sigmoïde est presque plate aux pressions partielles pulmonaires et raide aux pressions partielles tissulaires. L'hémoglobine se charge donc presque complètement au poumon et libère une grande fraction de sa charge pour une faible baisse de pression partielle dans les tissus. Une hyperbole de même P50 chargerait moins ou libérerait moins.
Du tissu actif à la livraison ciblée. Un tissu qui travaille produit du dioxyde de carbone, s'acidifie et s'échauffe. Ces trois conditions abaissent localement l'affinité de l'hémoglobine, donc augmentent la libération de dioxygène exactement où le besoin est le plus grand. Au poumon, les conditions inverses rétablissent l'affinité.
Exemples et références à connaître
- Teneur en dioxygène : environ 210 mL par litre d'air, environ 7 mL par litre d'eau à 20 °C à l'équilibre avec l'atmosphère, moins encore en eau chaude ou salée.
- Propriétés physiques : eau environ mille fois plus dense et cinquante fois plus visqueuse que l'air, coefficient de diffusion du dioxygène environ dix mille fois plus faible dans l'eau.
- Poumon de Mammifère : plusieurs centaines de millions d'alvéoles de 200 à 300 micromètres, surface totale de plusieurs dizaines de mètres carrés, barrière air sang de quelques dixièmes de micromètre.
- Adolf Fick, 1855, lois de la diffusion. Christian Bohr, 1904, effet du dioxyde de carbone sur l'affinité de l'hémoglobine, d'où le nom d'effet Bohr donné au déplacement vers la droite par le dioxyde de carbone et l'acidité.
- Pressions partielles de dioxygène : environ 13 kPa dans l'air alvéolaire pour une saturation proche de 97 %, environ 5 kPa dans un tissu au repos pour une saturation de 70 à 75 %, P50 de l'hémoglobine humaine proche de 3,5 kPa.
- Capacité de transport : environ 150 g d'hémoglobine par litre de sang, chaque gramme fixant environ 1,3 mL de dioxygène, soit près de 200 mL par litre, contre environ 3 mL dissous dans le plasma.
- Myoglobine musculaire : un seul hème, courbe hyperbolique, affinité supérieure à celle de l'hémoglobine, ce qui lui permet de recevoir le dioxygène libéré.
- Les poumons de tous les Tétrapodes sont homologues, les branchies de la moule et du Téléostéen sont convergentes. Deux exemples à opposer systématiquement.
Techniques
Analyse d'une courbe de saturation
Réflexe en quatre temps. Lire les axes, pression partielle de dioxygène en abscisse, saturation en pourcentage en ordonnée. Repérer la forme, sigmoïde ou hyperbole, et en déduire coopérativité ou site unique. Repérer la P50 de chaque courbe et classer les affinités. Placer les pressions partielles pulmonaire et tissulaire et lire la différence de saturation, qui mesure la quantité libérée.
Mini-exemple. Deux courbes sont données, l'une à pH 7,4, l'autre à pH 7,2. La seconde est déplacée vers la droite, sa P50 est plus élevée, donc l'affinité est plus faible. À 13 kPa les deux courbes sont proches de la saturation. À 5 kPa la courbe à pH 7,2 donne une saturation nettement inférieure. La différence de saturation entre poumon et tissu est donc plus grande à pH bas, ce qui signifie plus de dioxygène libéré dans un tissu acide, donc actif.
Le schéma bilan d'un échangeur
Un rectangle allongé pour la surface d'échange, de faible épaisseur annotée e. Au-dessus, le fluide du milieu avec une flèche de convection externe et l'indication de la pression partielle de dioxygène. En dessous, le fluide interne avec une flèche de convection interne et sa pression partielle. Des flèches verticales de diffusion traversent la surface, dioxygène dans un sens, dioxyde de carbone dans l'autre. Écrire la loi de Fick à côté et noter les trois leviers. Pour la branchie, dessiner les deux flèches de convection antiparallèles.
Le plan de synthèse sur ce chapitre
Le sujet repose presque toujours sur un raisonnement physique appliqué à des organismes. Gabarit : poser la contrainte physique, montrer les solutions structurales, terminer par les dispositifs dynamiques et leur régulation. Le plan par organisme est à éviter, le plan par levier de la loi de Fick est efficace.
Mini-exemple. « Les surfaces d'échanges respiratoires des Métazoaires. » Première partie, une contrainte commune, diffuser à travers une surface. Deuxième partie, des solutions structurales, surfaces étendues et fines, illustrées par le poumon, la branchie, les trachées. Troisième partie, des solutions dynamiques, convections et transporteurs, modulées selon les besoins.
Sujets classiques traités
Choisis ton niveau. Difficulté indicative ; les exercices qui se suivent restent dans l'ordre.
Sujet 1. Les surfaces d'échanges respiratoires des Métazoaires
Classiques de khôlle et concours · Synthèse, type écrit Agro-Véto
Voir le corrigé
Accroche possible : un humain au repos échange environ 250 mL de dioxygène par minute à travers quelques dixièmes de micromètre de tissu. Problématique : comment des organismes de milieux et de plans d'organisation différents résolvent le même problème physique.
I. Un problème posé par la diffusion. Loi de Fick, leviers, limite du tégument liée au rapport surface sur volume.
II. Des surfaces adaptées au milieu. Branchies externes et à contre-courant en milieu aquatique, poumons et trachées internalisés en milieu aérien, convergences dans un même milieu.
III. Des surfaces entretenues. Convection externe et interne, transporteur sanguin, modulation par les besoins.
Conclusion : homologies et convergences, ouverture sur les organismes à respiration tégumentaire.
Sujet 2. Respirer dans l'eau, respirer dans l'air
Classiques de khôlle et concours · Khôlle comparée
Voir le corrigé
Plan attendu. Un, comparer les deux milieux avec les quatre chiffres, teneur, densité, viscosité, diffusion. Deux, en déduire les contraintes, extraire beaucoup d'un fluide pauvre et cher à déplacer d'un côté, économiser l'eau de l'autre. Trois, confronter aux organismes disséqués, Téléostéen et moule contre souris et criquet. Argument attendu : l'extraction plus faible du poumon n'est pas une infériorité, elle suffit parce que l'air est riche.
Sujet 3. Efficacité du contre-courant
Classiques de khôlle et concours · Exercice raisonné de khôlle
Dans une branchie, l'eau entre avec une pression partielle de dioxygène de 20 kPa et le sang entre à 4 kPa. On suppose que les deux fluides ont la même capacité à transporter le dioxygène par unité de volume et circulent au même débit. Comparer la saturation maximale du sang sortant si les fluides circulent dans le même sens, ou en sens opposés.
Voir le corrigé
Étape 1, en co-courant, les deux fluides se rapprochent d'un équilibre commun. Avec des capacités égales, la pression partielle finale est la moyenne, soit 12 kPa. Le sang ne peut pas dépasser 12 kPa, l'eau ne peut pas descendre en dessous. L'extraction est au plus de 8 sur 20, soit 40 %. Étape 2, en contre-courant, le sang sort à l'endroit où l'eau entre, il peut donc approcher 20 kPa, et l'eau sort là où le sang entre, elle peut approcher 4 kPa. Le gradient reste favorable sur toute la longueur. Étape 3, l'extraction peut approcher 16 sur 20, soit 80 %, cohérent avec les valeurs mesurées chez les Téléostéens. Point où l'on se trompe : croire que le contre-courant crée du dioxygène, il ne fait que maintenir le gradient partout.
Sujet 4. L'hémoglobine, un transporteur ajusté aux besoins
Classiques de khôlle et concours · Khôlle
Voir le corrigé
Plan attendu. Un, pourquoi un transporteur, solubilité insuffisante, chiffres. Deux, la coopérativité, structure tétramérique, sigmoïde contre hyperbole, charge au poumon et décharge dans les tissus. Trois, la modulation de l'affinité, quatre facteurs, tous cohérents avec l'activité tissulaire, et rôle du 2,3-bisphosphoglycérate à plus long terme. Le colleur attend la courbe au tableau avec les deux points de fonctionnement.
Sujet 5. Analyse de documents sur la courbe de saturation
Classiques de khôlle et concours · Type écrit G2E
Document 1, courbes de saturation de l'hémoglobine à deux températures. Document 2, courbes à deux teneurs en dioxyde de carbone. Document 3, pressions partielles mesurées dans le sang artériel et dans le sang veineux d'un muscle au repos et pendant un exercice, avec la température du muscle dans les deux cas.
Voir le corrigé
Étape 1, dans les documents 1 et 2, la courbe la plus à droite correspond à la température ou au dioxyde de carbone les plus élevés, donc à une affinité plus faible. Étape 2, dans le document 3, l'exercice abaisse la pression partielle veineuse et élève la température, sans changer la pression artérielle. Étape 3, combiner, la baisse de pression partielle place le tissu dans la zone raide de la courbe et l'échauffement déplace la courbe vers la droite, les deux effets augmentent la libération. Étape 4, conclure que la livraison de dioxygène augmente dans le muscle actif sans que le poumon ait changé de fonctionnement. Point où l'on se trompe : lire une courbe comme une quantité de dioxygène, alors qu'elle donne une saturation, la quantité dépend aussi de la concentration en hémoglobine.
Sujet 7. Homologie et convergence des surfaces respiratoires
Classiques de khôlle et concours · Oral de travaux pratiques
Voir le corrigé
Question type : comparer les branchies du Téléostéen et de la moule, puis les poumons de la souris et les trachées du criquet. Réponse attendue. Définir les deux notions. Montrer que les branchies partagent des traits fonctionnels, subdivision, courant d'eau, vascularisation, mais n'ont pas d'origine commune, donc convergence sous la même contrainte. Montrer que poumons et trachées résolvent la même contrainte de déshydratation par des solutions différentes, internalisation dans les deux cas, mais avec ou sans transport sanguin, donc convergence fonctionnelle partielle. Prolongement : les poumons des Tétrapodes sont homologues entre eux.
Sujet 6. Estimer l'apport des alvéoles avec la loi de Fick
Autres exercices · Exercice chiffré
Un poumon de 5 litres est modélisé soit par une sphère unique, soit par 300 millions d'alvéoles sphériques de 250 micromètres de diamètre. Comparer les surfaces d'échange et en déduire le facteur gagné sur le flux, à épaisseur et gradient égaux.
Voir le corrigé
Étape 1, une sphère de 5 litres a un rayon d'environ 10,6 cm et une surface d'environ 0,14 m². Étape 2, une alvéole de 250 micromètres a une surface d'environ 2 × 10⁻⁷ m², et 300 millions d'alvéoles donnent environ 60 m². Étape 3, le rapport est de l'ordre de 400. Par la loi de Fick, le flux est multiplié par le même facteur. Point où l'on se trompe : oublier que la subdivision multiplie la surface sans changer le volume, ce qui est tout l'intérêt.
Erreurs fréquentes
- Confondre respiration au sens des échanges gazeux et respiration cellulaire. Préciser l'échelle dès la première phrase.
- Raisonner avec des concentrations au lieu de pressions partielles. La diffusion suit les pressions partielles, ce qui explique que l'eau et l'air puissent être à l'équilibre avec des teneurs très différentes.
- Dire que la courbe sigmoïde explique la coopérativité. C'est l'inverse, la coopérativité explique la forme sigmoïde.
- Présenter le poumon comme moins efficace que la branchie. L'extraction est plus faible, mais le fluide est trente fois plus riche et bien moins cher à déplacer.
- Décrire les branchies du poisson et de la moule comme homologues parce qu'elles se ressemblent. La ressemblance fonctionnelle dans un même milieu est précisément la définition d'une convergence.
Fiche rédigée à partir du programme officiel de BCPST (2021), thématique « Sciences de la vie », partie SV-B « Interactions entre les organismes et leur milieu de vie », sous-partie SV-B-1. Elle traite des surfaces respiratoires des Métazoaires, des échanges gazeux par diffusion, des convections externe et interne, et du transport du dioxygène par l'hémoglobine.